
Le cholestérol ne parle pas tout seul : à la découverte de l’« oxystérolome »
Une nouvelle façon de comprendre comment le métabolisme des stérols peut produire une multitude de signaux biologiques
Et si le cholestérol était le point de départ d’un véritable langage biologique ?
Le cholestérol est souvent associé aux maladies cardiovasculaires et au « mauvais cholestérol ». Pourtant, dans notre organisme, cette molécule est indispensable : elle participe notamment aux membranes des cellules et sert de matière première à de nombreuses molécules. Une équipe du Centre de recherche en cancérologie de Toulouse (Inserm, CNRS, Université de Toulouse) propose aujourd’hui de regarder autrement une partie de son métabolisme. Son idée centrale : les molécules oxygénées issues du cholestérol et d’autres stérols, appelées oxystérols, ne doivent pas être étudiées uniquement une par une. Les chercheurs proposent de considérer ces molécules et leurs descendants métaboliques comme les éléments d’un réseau dynamique qu’ils désignent sous le terme d’“oxystérolome” ».
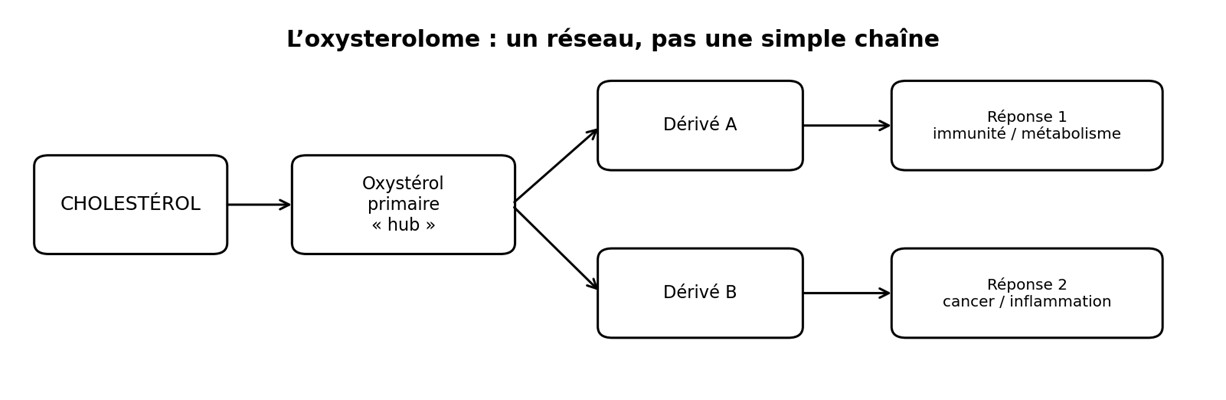
Schéma simplifié : un oxystérol peut servir de « hub » et donner naissance à plusieurs métabolites aux effets différents
Un métabolite peut en cacher plusieurs autres
Les oxystérols ont souvent été étudiés individuellement, en privilégiant leurs concentrations, leurs cibles et leurs effets biologiques. Les auteurs proposent d’élargir cette approche en considérant également leur devenir métabolique. Une première transformation du cholestérol produit un oxystérol « primaire ». Celui-ci peut ensuite être modifié à plusieurs reprises par des enzymes : hydroxylation, oxydation, réduction, hydrolyse, sulfatation, estérification ou encore conjugaison avec d’autres molécules. Chaque étape peut créer un nouveau composé et donc, potentiellement, une nouvelle fonction biologique. Le résultat ressemble davantage à un arbre qui se ramifie qu’à une ligne droite.
Trois façons d’enrichir le « message » du cholestérol
Première possibilité : la diversification des récepteurs et des cibles. L’exemple du 25-hydroxycholestérol (25-HC) est particulièrement parlant. Il peut agir sur les récepteurs LXR, impliqués notamment dans l’équilibre du cholestérol. Après transformation en 7α,25-dihydroxycholestérol, il devient un signal reconnu par un autre récepteur, EBI2/GPR183, qui participe au positionnement de certaines cellules immunitaires. Une même molécule de départ peut donc orienter des réponses biologiques différentes.
Deuxième possibilité : le changement d’effet. Le 25-HC et son dérivé sulfaté 25HC3S proviennent du même précurseur mais peuvent exercer des effets différents sur le métabolisme lipidique, l’inflammation et les mécanismes de régulation cellulaire. Dans la voie des époxycholestanoïdes, l’oncosterone (OCDO) peut favoriser la progression de cancers du sein, alors qu’un métabolite situé plus loin dans cette voie, le 27H-OCDO, contrecarre plusieurs effets associés à l’OCDO. Le mécanisme précis du 27H-OCDO reste toutefois à établir.
Troisième possibilité, plus surprenante : l’apparition d’une fonction nouvelle. La dendrogénine A (DDA), issue d’une transformation d’un époxycholestérol avec l’histamine, possède des propriétés qui ne sont pas simplement celles de ses précurseurs. Des travaux antérieurs lui ont notamment associé des effets sur la différenciation des cellules tumorales, l’autophagie et les cellules souches neurales. Plus récemment, l’équipe a montré que DDA exerce également un contrôle sélectif de réponses immunitaires qui n’est reproduit ni par d’autres oxystérols ni par des agonistes conventionnels des récepteurs LXR. Un même système récepteur peut donc produire des réponses biologiques différentes selon la nature du métabolite qui l’active..
Un concept issu de travaux expérimentaux
Cette vision s’appuie notamment sur plus d’une décennie de travaux de l’équipe sur le métabolisme des 5,6-époxycholestérols. L’identification de la dendrogénine A (DDA), de l’oncostérone (OCDO) puis du 27H-OCDO a montré expérimentalement que des transformations successives de stérols étroitement apparentés peuvent générer des molécules possédant des activités biologiques très différentes, voire opposées. Ces observations ont contribué à faire émerger une vision plus générale : celle de réseaux métaboliques capables de diversifier progressivement la signalisation issue des stérols.
Pourquoi ce nouveau cadre conceptuel est-il important ?
Elle change la question scientifique. Il ne s’agit plus seulement de demander « combien y a-t-il de telle molécule ? », mais aussi « où va-t-elle, à quelle vitesse, et quels produits sont fabriqués ensuite ? ». La concentration d’un métabolite dans un tissu ne suffit pas toujours à décrire l’activité d’une voie : elle dépend de sa production, de sa transformation, de son transport, de son stockage et de son élimination. Les chercheurs veulent donc reconstruire les « flux » métaboliques, c’est-à-dire la circulation des molécules dans ce réseau.
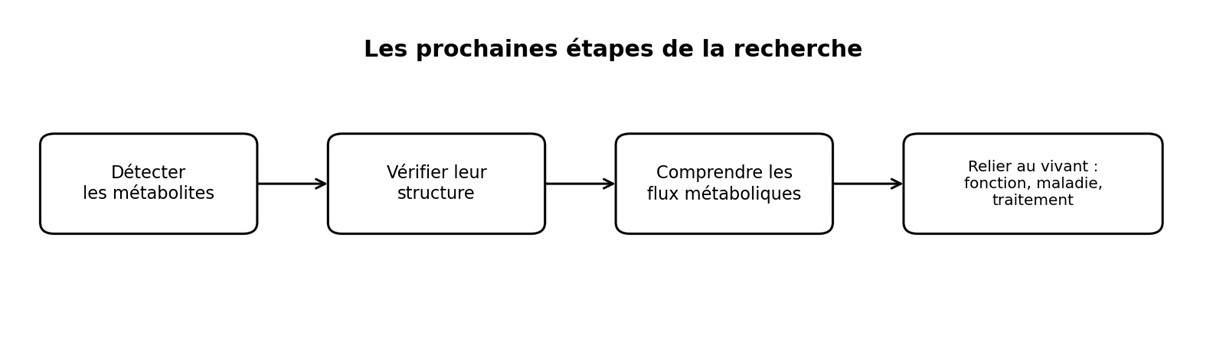
Pour décoder l’oxystérolome, plusieurs approches devront être combinées : chimie analytique, spectrométrie de masse, traçage isotopique, biologie, modélisation et analyse spatiale.
Des enjeux pour le cancer, le vieillissement et les maladies métaboliques
L’enjeu est potentiellement large. Les oxystérols sont déjà impliqués dans le métabolisme lipidique, l’immunité, l’inflammation, le développement, le vieillissement et le cancer. Comprendre les réseaux qui les relient ou des stratégies permettant de modifier le flux d’une voie métabolique afin de favoriser ou de limiter la production de certains signaux. Les auteurs envisagent également que ces réseaux puissent participer à la communication métabolique entre organes, une possibilité qui devra être explorée expérimentalement..
Une hypothèse prometteuse, mais encore à démontrer
Le concept d’oxystérolome s’appuie sur des voies métaboliques et des molécules déjà caractérisées expérimentalement, mais l’étendue réelle de ce réseau reste largement inconnue. Les réactions enzymatiques connues suggèrent que plusieurs centaines de dérivés oxygénés pourraient théoriquement être produits. Cela ne signifie cependant pas qu’ils existent tous dans l’organisme ni, surtout, qu’ils constituent tous des molécules de signalisation. Pour passer d’un métabolite potentiel à un signal biologique, il faut confirmer sa structure, démontrer sa production dans des conditions physiologiques, établir sa régulation et identifier ses cibles et ses effets à des concentrations pertinentes..
La prochaine étape : passer de la liste au réseau
La recherche devra donc combiner plusieurs technologies : spectrométrie de masse et imagerie pour détecter les molécules, chimie de synthèse pour confirmer leur structure, traçage isotopique pour suivre leur devenir, puis modélisation et biologie expérimentale pour comprendre les connexions entre les voies. Une question essentielle sera de savoir si chaque tissu possède son propre « oxystérolome » et comment celui-ci se transforme avec l’âge ou au cours des maladies.
À retenir : l’oxystérolome propose de passer d’une vision des oxystérols comme molécules isolées à celle d’un réseau dynamique. Les transformations successives des stérols peuvent générer des molécules aux fonctions biologiques différentes et ainsi diversifier l’information biologique. Cartographier ces réseaux et leurs flux pourrait renouveler notre compréhension de leur rôle en physiologie, dans les cancers et dans différentes maladies..
Source : Ayadi S. et al., « The Oxysterolome Iterative Metabolism Expands Sterol Signaling », Trends in Endocrinology and Metabolism,